Одной из наиболее распространенных причин снижения зрения является катаракта частичное или полное помутнение вещества или капсулы хрусталика.
Хрусталик — уникальная структура, входящая в состав оптической системы глаза, основными функциями которой являются светопроведение и фокусировка изображения на сетчатке. Для осуществления этих функций хрусталик должен долгое время сохранять свое главное свойство — прозрачность. Она достигается благодаря тому, что в хрусталике отсутствуют кровеносные и лимфатические сосуды, нервные стволы, а питание хрусталика осуществляется путем диффузии и активного транспорта через капсулу растворенных во внутриглазной жидкости питательных веществ и кислорода.
Как известно, со всех сторон хрусталик покрыт тонкой эластичной оболочкой – капсулой. Часть капсулы, покрывающей его переднюю поверхность, называется передней капсулой хрусталика, а участок, покрывающей заднюю поверхность, – задней капсулой. Толщина передней капсулы составляет 11–18 мкм, задняя почти в 2,5 раза тоньше – 4–5 мкм [2]. Капсула состоит из коллагенов, ламинина и мукополисахарида гепаран-сульфата, который играет важную роль в организации структуры матрикса и поддержании прозрачности капсулы. При световой микроскопии она представляет собой гомогенную бесструктурную мембрану, на внутренней задней поверхности которой располагаются углубления, куда входят волокна хрусталика [3].
Под передней капсулой хрусталика расположен однослойный эпителий, который простирается до области экватора. В эпителии хрусталика выделяют 3 популяции клеток:
– поверхностный слой клеток, содержащий органеллы и обеспечивающий активный транспорт ионов, аминокислот, предшественников синтеза липидов в хрусталик, а также облегченную диффузию глюкозы;
– дифференцирующиеся эпителиальные клетки, которые, удлиняясь, обеспечивают рост хрусталика и превращаются в хрусталиковые волокна в зоне экватора;
– зрелые хрусталиковые волокна, в которых отсутствует большинство клеточных органелл.
Волокна хрусталика контактируют друг с другом посредством шаровидно-гнездовых, языковидных соединений и десмосом [4].
Молодые лентовидные волокна оттесняют более старые к центру и образуют вокруг плотного ядра эластичную кору хрусталика, которая является наиболее метаболически активной зоной. Хрусталиковым волокнам в центре ядра столько же лет, сколько и всему организму.
Поскольку в ходе окончательной дифференцировки в хрусталиковых волокнах происходит постепенный распад ядра, митохондрий и других внутриклеточных органелл, в зрелом хрусталике содержится большой объем ткани, неспособной к синтезу белка и осуществлению метаболических процессов. Однако сохраняется некоторая способность к синтезу ограниченного набора протеинов, и имеются механизмы противодействия оксидативному стрессу, способному нарушить функционирование существующих белков. Источником энергии для этих процессов служит анаэробный гликолиз. Чтобы доставить глюкозу от поверхности хрусталика к внутренним слоям путем диффузии (ее коэффициент диффузии – 10-6 см2/с), потребовалось бы около 1–2 ч для хрусталиков лягушки и мыши и 4–8 дней – у человека [5]!
Таким образом, становится понятно, что хрусталиковые волокна имеют весьма ограниченные возможности для поддержания гомеостаза и противодействия внешним повреждающим факторам и полностью зависят от функционирования эпителия передней капсулы и состава внутриглазной жидкости.
В состав хрусталика входит большое количество специфических белков (35–40%) и воды, причем на долю последней приходится лишь 60–65% массы хрусталика. Выделяют несколько типов белков: водорастворимые α-, β- и γ-кристаллины (80–90% сухой массы) и водонерастворимые белки (10–20%). Именно растворимые цитоплазматические белки кристаллины обусловливают высокий индекс рефракции, образуя упорядоченный гель с низким содержанием воды, при этом коэффициент преломления цитоплазмы клеток равен коэффициенту преломления мембран [6].
Их концентрация увеличивается до 50% к центру хрусталика, благодаря чему происходит компенсация сферических аберраций [7]. Альфа-кристаллины состоят из последовательности 80–100 аминокислот. J. Horwitz впервые описал α-кристаллины как шапероны – класс белков, главная функция которых состоит в восстановлении правильной нативной третичной или четвертичной структуры белков, а также в образовании и диссоциации белковых комплексов [8]. Так, α-кристаллины могут предотвращать агрегацию частично денатурированных белков и возвращать их нативную структуру. В экспериментах на животных показано, что появление мутаций в генах, кодирующих α-кристаллины, приводит к развитию катаракты [9].
Распределение белков в хрусталике неравномерно. Отмечается относительное преобладание α- и β-кристаллинов в коре, а водонерастворимых белков – в ядре хрусталика. Гамма-кристаллин также преобладает в ядре, а именно в центральных волокнах, которые располагаются вдоль оптической оси хрусталика [10].
С возрастом содержание в хрусталике низкомолекулярной фракции α-кристаллина уменьшается. Количество γ-кристаллина также имеет тенденцию к снижению. К возрастным особенностям относится и такая модификация белков, как образование дисульфидных связей между молекулами белка и глутатионом или цистеином [11].
Для поддержания прозрачности и специфического строения хрусталика недостаточно лишь механизма по обеспечению питательными веществами внутренних слоев, важно также регулировать объем этих клеток. Волокна хрусталика ориентированы строго определенным образом и прилегают очень плотно друг к другу, поскольку для уменьшения рассеивания света межклеточное пространство должно быть меньше длины световой волны. На поперечном срезе хрусталиковые волокна имеют вид вытянутого шестиугольника размером 3х9 μм, а величина межклеточного пространства составляет 0,01 μм [12]. При уменьшении внутриклеточного объема межклеточное пространство расширяется, что ведет к снижению оптических свойств хрусталика.
Для функционирования хрусталика и поддержания прозрачности очень важен баланс жидкости. Благодаря наличию в клетках хрусталика аквапоринов (AQPs) осуществляется быстрый перенос большого количества жидкости. Это свойство играет важную роль в осуществлении аккомодации. Аквапорины (AQP) – семейство встроенных в мембрану транспортных белковых каналов, широко представленное во многих тканях организма человека. За открытие первого члена этого семейства, AQP1, исследователь Peter Agre в 2003 г. получил Нобелевскую премию по химии. Благодаря этому открытию стало понятно, каким образом клеточная мембрана, лишь ограниченно проницаемая для молекул воды, пропускает ее в цитоплазму эритроцитов, почечных проксимальных канальцев и некоторых других тканей с чрезвычайно высокой скоростью. Архитектура канала такова (узкая щель в центре и расширения на противоположных концах), что вода может проникать только в виде тонкой цепочки молекул, соединенных водородными связями. Подобные белки, способные проводить 3х109 молекул воды в секунду в расчете на каждый мономер, есть во всех живых клетках. У человека обнаружено 13 видов аквапоринов.
Эпителиальные клетки хрусталика в большом количестве содержат AQP1, а в последнее время появились сообщения о том, что в них обнаружены также AQP5 и AQP7. В процессе дифференцировки и превращения в хрусталиковые волокна экспрессия AQP1 уменьшается, а вместо него появляются AQP0, также известный, как основной внутренний белок (major intrinsic protein (MIP)), поскольку его количество составляет более 50% всех мембранных белков хрусталика, и AQP5 (5% от AQP0) [13, 14]. Проницаемость для воды MIP составляет 45 μм/с, в то время как в клетках эпителия благодаря AQP1 этот показатель достигает 135 μм/с, но с учетом количества этих белков установлено, что их суммарная проницаемость одинакова [15]. Дальнейшие исследования показали, что на проницаемость AQP0 (но не AQP1) могут оказывать влияние некоторые обстоятельства, в частности, изменение рН и уровня Са2+ [16]. Также AQP0 выполняет функцию структурного белка, взаимодействуя со специфическими белками цитоскелета клеток хрусталика — факинином и филенсином [17]. При возникновении мутаций в гене AQP0 описаны случаи врожденной катаракты [18].
Сохранность прозрачности хрусталика обеспечивается сбалансированным физико-химическим состоянием его белков и липидов мембран, содержанием воды и ионов, поступлением и выделением продуктов метаболизма.
В хрусталике содержатся углеводы и их производные, восстановители глутатиона, цистеина, аскорбиновой кислоты и др. Содержание белка, воды и электролитов значительно отличается от тех пропорций, которые обнаруживаются в водянистой влаге (ВВ), стекловидном теле и плазме крови. Так, в нем имеются высокий уровень ионов К+ (в 25 раз больше, чем в ВВ) и низкий уровень ионов Na+.
Для объяснения процессов обмена в хрусталике была предложена модель, отражающая движение интенсивного ионного потока внутри хрусталика. Установлено, что ионный поток начинает проникать в области переднего и заднего полюса хрусталика через щели между волокнами, принося в основном ионы Na+, затем проникает внутрь клеток и по щелевидным соединениям движется из клетки в клетку в направлении экватора (рис. 1). Там в клетках герминативной зоны отмечается наиболее высокая концентрация Na+/K+-АТФазы, и ионы Na+ активно выводятся из хрусталика [19].
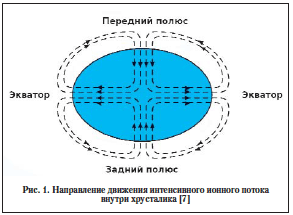
Gao et al. подсчитали, что активность Na+/K+-помпы на единицу площади в области экватора в 20 раз выше, чем в области переднего полюса хрусталика [20]. Таким образом обеспечиваются высокий уровень ионов К+ и низкий уровень ионов Na+. Кроме того, отмечается и различие в строении Na+/K+-помпы в этих зонах: α1-изоформа локализуется в экваторе, а α2-изоформа – на переднем полюсе [20]. Примечательно, что эти изоформы имеют разную регуляцию: α1 – β-адренэргическими рецепторами посредством протеинкиназы A, α2-изоформа – β-адренэргическими рецепторами посредством протеинкиназы С [21]. Влияние на внутрихрусталиковый ионный поток может послужить точкой приложения в создании новых фармакологических средств борьбы с катарактой.
При катаракте отмечается значительное снижение концентрации этих ионов наряду со снижением активности Na+/K+-АТФазы. Показано, что одной из причин этого может служить повышение уровня Н2О2. В норме уровень Н2О2 в тканях хрусталика и ВВ составляет около 20–30 µМ, в то время как у 1/3 обследованных пациентов с имеющейся катарактой – повышен в 2–7 раз в хрусталике и 30-кратно — в ВВ [22]. Проведенные in vitro исследования позволили установить, что при снижении антипероксидазной активности хрусталика нарушается деятельность Na+/K+-АТФазы, ингибируется гидролиз АТФ и в дальнейшем происходит гибель клеток эпителия [23].
Важное значение в процессе образования помутнений в хрусталике имеют изменения водно-солевого и энергетического обмена. При катаракте происходит изменение микроэлементного, аминокислотного состава хрусталика, наблюдается скопление в его тканях натрия, кальция, цинка и воды, уменьшение содержания калия, алюминия, растворимых белков, серосодержащих аминокислот, аскорбиновой кислоты, рибофлавина, цитохрома. Снижается активность АТФ-азы, пируватфосфокиназы, карбоангидразы и т. д.
В настоящее время одной из доминирующих теорий катарактогенеза является теория окислительного стресса. При исследовании хрусталиков пациентов с катарактой, в отличие от нормальных возрастных изменений, обнаруживаются окисление белков не только мембран, но и цитоплазмы, изменение их конфигурации с обнажением тиольных групп, которые в норме находятся внутри белковой структуры, окисление метионина, цистеина, а также окисление липидов мембран. Кроме того, для катаракты характерно формирование высокомолекулярных белковых комплексов, ковалентно связанных дисульфидными связями [24]. Такие белковые агрегации приводят к тому, что свет в этих участках рассеивается, и прозрачность хрусталика снижается.
Значительный интерес представляет хиноидная теория, которая придает большое значение в патогенезе катаракты веществам хиноидной группы, образующимся в результате нарушения метаболизма ароматических аминокислот (триптофана, тирозина и др.). Согласно этой теории, помутнение хрусталика возникает, когда его водорастворимые белки начинают денатурироваться и превращаться в непрозрачные субстанции под действием хиноидных продуктов.
В исследованиях было обнаружено, что вещество пиреноксин конкурентно ингибирует действие хиноидных веществ, а также нормализует обмен глюкозы в хрусталике и препятствует отложению сорбита, стабилизирует клеточные мембраны, ингибирует перекисное окисление липидов [25].
Глазные капли Каталин, содержащие пиреноксин, были впервые зарегистрированы в Японии в 1958 г. фармацевтическим концерном Senju Pharmaceutical и в настоящее время применяются более чем в 20 странах мира.
Эффективность препарата Каталин продемонстрирована как в лабораторных испытаниях, так и в клинических исследованиях.
J. Kociecki et al. провели исследование, в котором приняли участие 72 пациента старше 40 лет с начальной стадией возрастной катаракты и остротой зрения не меньше 0,5. 35 пациентов получали инстилляции Каталина, 37 – плацебо. Оценка результатов через 3, 6, 12, 18 и 24 мес. происходила с использованием денситометрических измерений прозрачности хрусталика на анализаторе переднего отрезка глаза EAS-1000 (NIDEK, Япония). Авторы пришли к заключению, что Каталин эффективно предотвращает развитие помутнений в хрусталике в сравнении с группой плацебо, особенно у пациентов моложе 60 лет, и действие препарата усиливается при непрерывном применении в течение 18 мес. [26].
Г.С. Полунин и соавт. в своей работе по изучению терапевтической эффективности Каталина у 50 пациентов с возрастной катарактой посредством общепринятых офтальмологических исследований и денситометрических исследований прозрачности хрусталика отмечали положительные результаты. Определялось достоверное снижение денситометрических показателей оптической плотности в передних и задних кортикальных слоях, в задней капсуле хрусталика. В то же время в контрольной группе, использовавшей Таурин, показатели оптической плотности практически не изменялись, что также было расценено как положительный эффект [27].
Имеются сообщения о том, что при длительном наблюдении за пациентами, которые применяли Каталин и некоторые другие антикатарактальные препараты, уменьшались не только интенсивность помутнений, но и их площадь [26].
Результаты исследований убедительно свидетельствуют о том, что Каталин оказывает антикатарактальное действие на все слои хрусталика, но особенно – на его кортикальные слои и заднюю капсулу. Важно, что также была показана хорошая переносимость этого препарата пациентами всех возрастных групп, побочные явления наблюдались крайне редко. Высокая терапевтическая эффективность и безопасность при длительном применении позволяют рекомендовать глазные капли Каталин для предотвращения прогрессирования возрастной катаракты, особенно на начальных стадиях.
Таким образом, не остается сомнений в том, что поддержание метаболизма хрусталика является ключевым фактором сохранения его основного свойства – прозрачности. Поэтому исследования этиологии катаракты в настоящее время проводятся на стыке медицины, биохимии, биофизики и молекулярной биологии. Тем не менее патофизиологические процессы начала этого заболевания еще далеко не полностью установлены, и во всем мире интенсивно ведутся исследования причин и механизмов развития катаракты. Ведь знание этапов патогенеза возникновения возрастной катаракты необходимо для разработки эффективной медикаментозной терапии.